39.AntitoxinDesign:原图、模型逻辑与研究范式

39.AntitoxinDesign:原图、模型逻辑与研究范式
Perry论文题名: De novo designed proteins neutralize lethal snake venom toxins
期刊与年份: Nature,2025。论文原文。
范围为正文全部编号主图及其子图,包含流程示意图。Extended Data 和 Supplementary Figures 不在本次范围。页码指阅读时所用 PDF 的文件页码。
研究问题: 从头设计的蛋白能否高亲和力结合蛇毒三指毒素,并在体外和小鼠中中和其毒性?
用结构设计解决传统抗蛇毒的不足
传统抗蛇毒血清依靠免疫动物产生多克隆抗体,三指毒素免疫原性较弱、生产与冷链成本以及反应风险使某些毒素中和不足。本文并不只问蛋白能否结合一个目标,而是问能否通过结构设计得到稳定、可制造并具有功能中和作用的小蛋白。根据引言可推测idea在于把毒素的致病几何转成设计约束,利用新生成方法跳过大规模随机库;这属于论文逻辑重建,不是作者个人构思历史。
骨架生成、序列设计与结构筛选是三个步骤
因此要分别报告初始设计命中、优化后的结合改进和功能保护,才能让读者判断模型、筛选与实验各自增加了什么证据。
筛选规模让“有限实验”有了具体含义。短链神经毒素初轮检测44个设计,获得一个较弱命中,随后78个部分扩散优化候选中产生多个更强binder;长链初轮42个设计与后续38个优化结构也体现迭代过程。因而不应把最优蛋白看作第一次生成便毫无筛选地达到纳摩尔亲和力。初筛、优化与最终功能测定的分母不同,最终成功蛋白不能反推所有生成结构都有效。
共识模板的选择是另一项有意义的设计。作者用多个细胞毒素序列得到代表模板,希望覆盖家族共享部位;这在原则上能降低逐物种设计成本,但真实毒液还有组分比例和非目标毒素差异。七种全毒液的体外保护是一项独立泛化检验,仍不能由共识序列本身保证。小蛋白的制造、热稳定性及潜在组织渗透具有应用吸引力,但组织渗透在本文中主要是设计动机,不应把它当成已经完成的人体分布实验。
RFdiffusion输入毒素结构及指定的界面或几何条件,从噪声去噪生成结合蛋白骨架。ProteinMPNN再设计与骨架相容的序列,AlphaFold2与Rosetta相关指标用于筛选可能稳定结合的候选。模型输出是结构与序列,不是动物存活概率;生成、折叠验证和疾病功能需要接续实验。这是预训练生成模型的目标条件设计,不是从蛇毒临床患者标签训练诊断模型。
短链、长链神经毒素与细胞毒素的作用不同,因而界面策略也不同。神经毒素结合可通过β链配对和空间阻挡阻止其接近受体,细胞毒素设计更直接覆盖参与膜损伤的环区;共识毒素模板则试图增加家族覆盖。这样的生物学约束说明架构为什么合适:生成器探索几何,但目标的功能部位决定哪些几何值得探索。
初始命中还经过部分扩散优化,实验筛选不是零。SHRT和LNG从较弱初始结合提高到纳摩尔量级,说明生成后优化仍重要;CYTX亲和力相对较弱,后续体内结果也不能与神经毒素一概而论。论文验证链依次为可制备和稳定、结合、结构、细胞功能及小鼠保护,越向后越接近蛇咬伤问题,却尚未覆盖所有毒液组分及人体治疗。
Figure 1|毒素靶点及蛋白设计
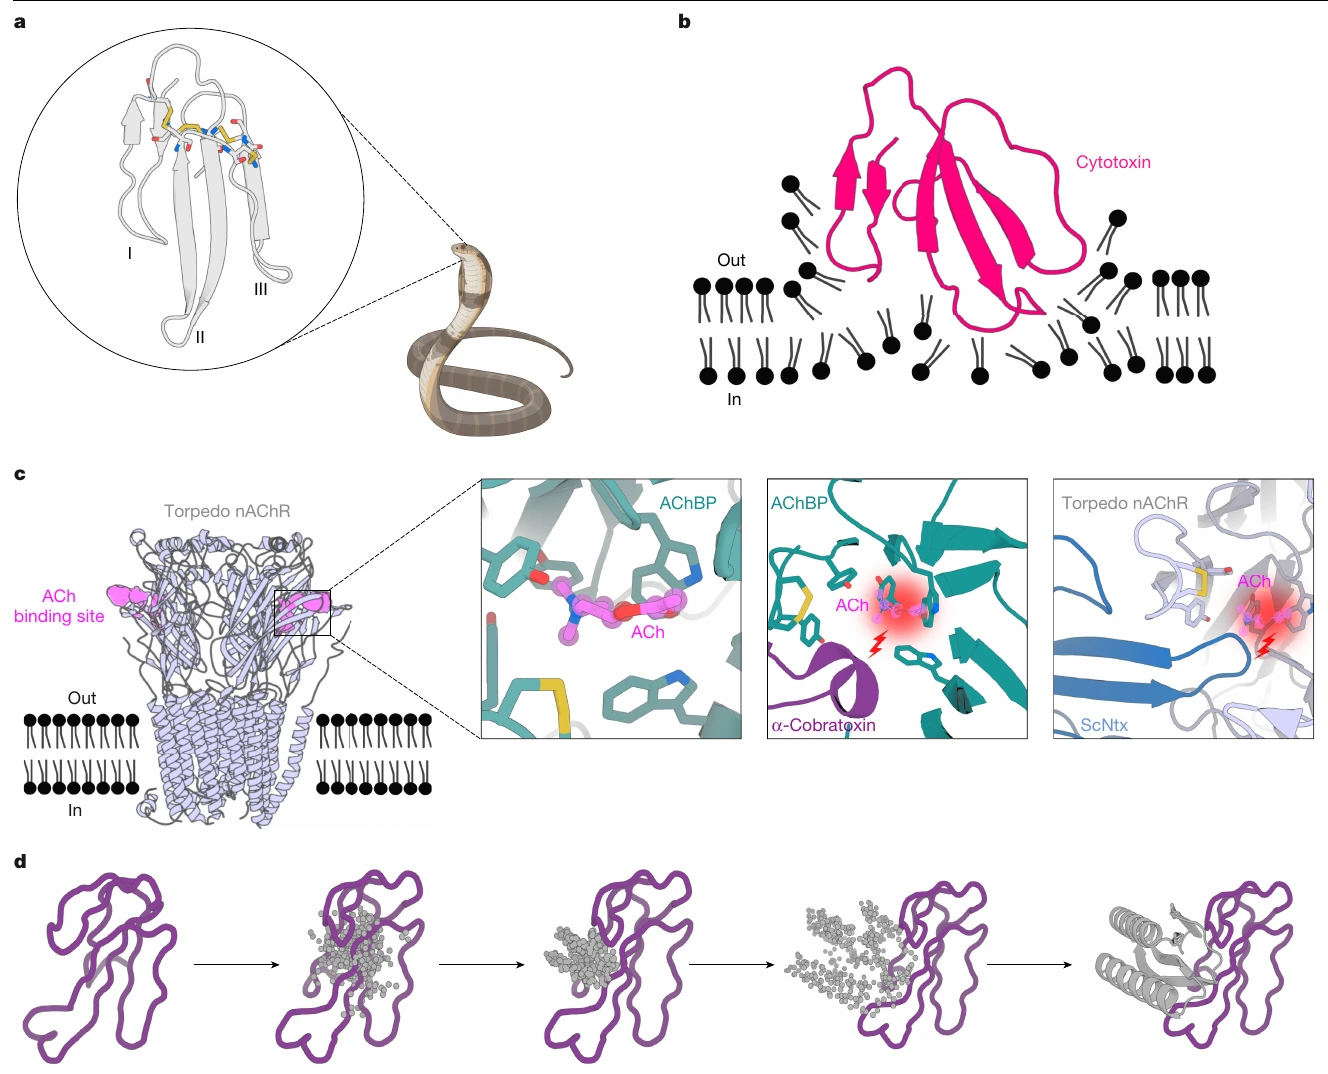
原图来源:所用 PDF 文件第 2 页,Figure 1。点击图片可查看原图。
图1先把毒素怎样致病解释清楚,才引出生成约束。乙酰胆碱受体结合被阻断与细胞膜受损是不同机制,因此一个对神经毒素有效的binder未必能处理中和细胞毒素。RFdiffusion去噪轨迹展示骨架逐步形成,属于模型流程示例,并不提供命中率或实际功能数据。结构条件将设计限制在可阻碍毒素作用的区域,这比仅优化任意高亲和界面更接近治疗问题。仍需看后续蛋白是否真实制备和中和,不能仅因模型图贴合就认定成功。
| 子图 | 讲解 |
|---|---|
| a | 三指毒素的结构显示三个指状区域和保守半胱氨酸,为结合蛋白设计提供靶标几何。 |
| b | 细胞毒素与脂双层相互作用示意,解释需要阻断的膜损伤过程。 |
| c | 乙酰胆碱受体及局部结构展示短链、长链神经毒素阻挡 ACh 结合位点的方式,解释神经肌肉毒性。 |
| d | RFdiffusion 从随机残基分布逐步去噪,围绕指定 α-cobratoxin β 链设计结合蛋白。 |
Figure 2|设计蛋白的生化性质
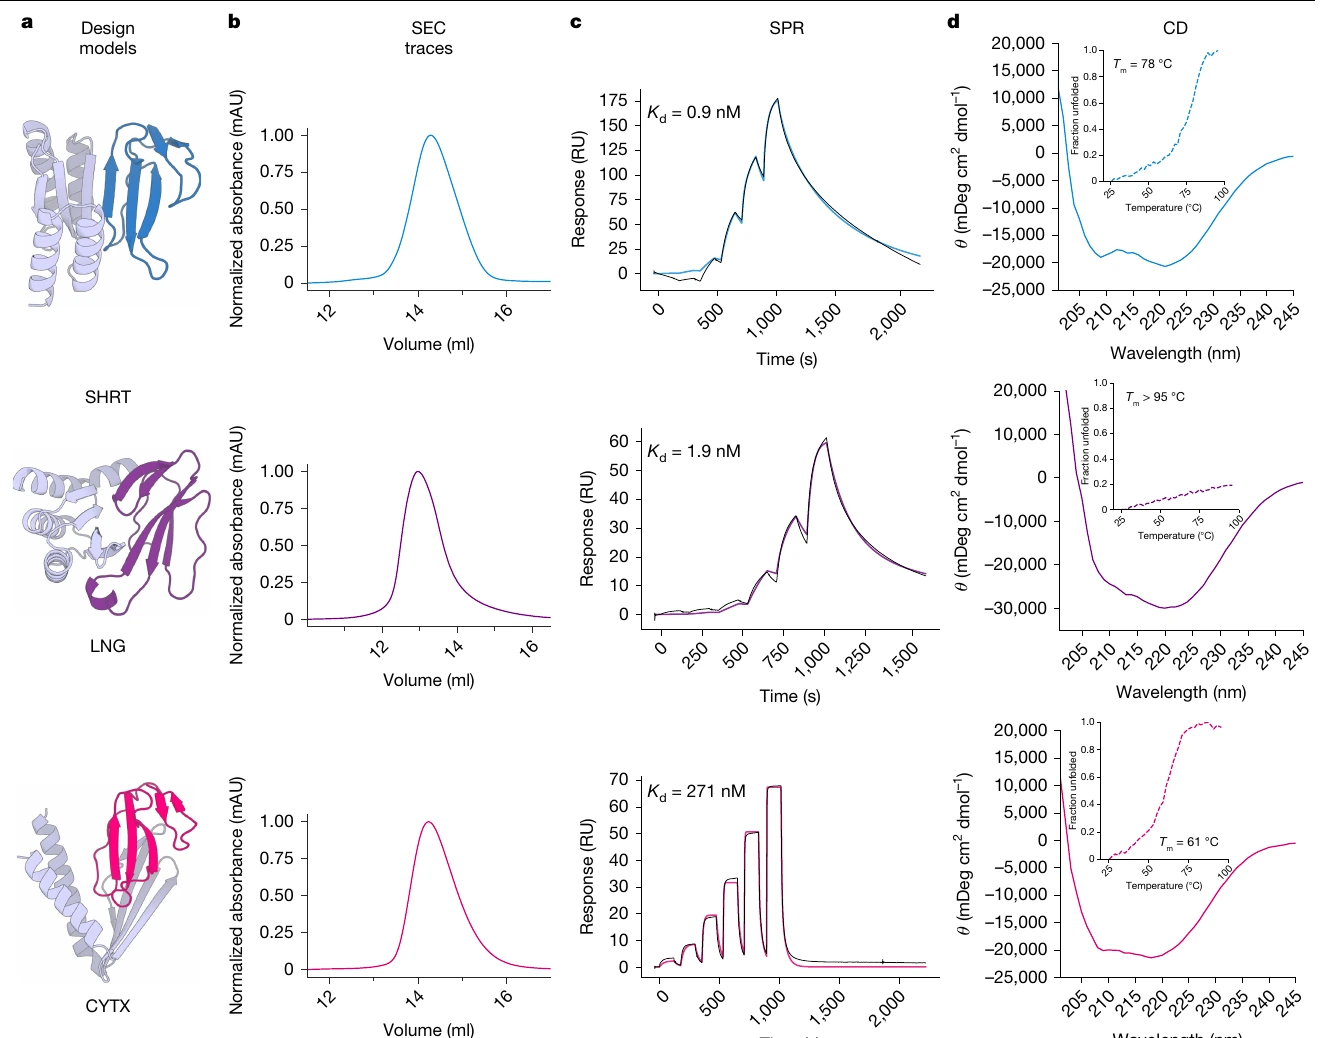
原图来源:所用 PDF 文件第 3 页,Figure 2。点击图片可查看原图。
图2解决计算蛋白能否成为实物的问题。SEC检查聚集与大小,SPR测结合动力学,CD和温度曲线检查二级结构与稳定性,三者不能互相替代。SHRT约0.9纳摩尔、LNG约1.9纳摩尔与CYTX约271纳摩尔的结合强度差异值得保留,不能统称都同样高效。高热稳定性支持制造和储运潜力,却不直接证明低免疫原性或人体半衰期。生化结果建立了后续功能实验可解释的基础,并使生成模型的折叠预测得到独立检验。
| 子图 | 讲解 |
|---|---|
| a | 展示短链神经毒素、α-cobratoxin 和共识细胞毒素的蛋白结合设计模型。 |
| b | 纯化蛋白 SEC 洗脱曲线检验大小及聚集状态,评价设计是否能作为稳定蛋白制备。 |
| c | SPR 结合曲线及 Kd 定量说明设计蛋白与目标毒素高亲和结合。 |
| d | CD 光谱和温度曲线验证预期 αβ 二级结构及热稳定性,说明蛋白不是只在计算中折叠。 |
Figure 3|实验结构与设计结构的吻合
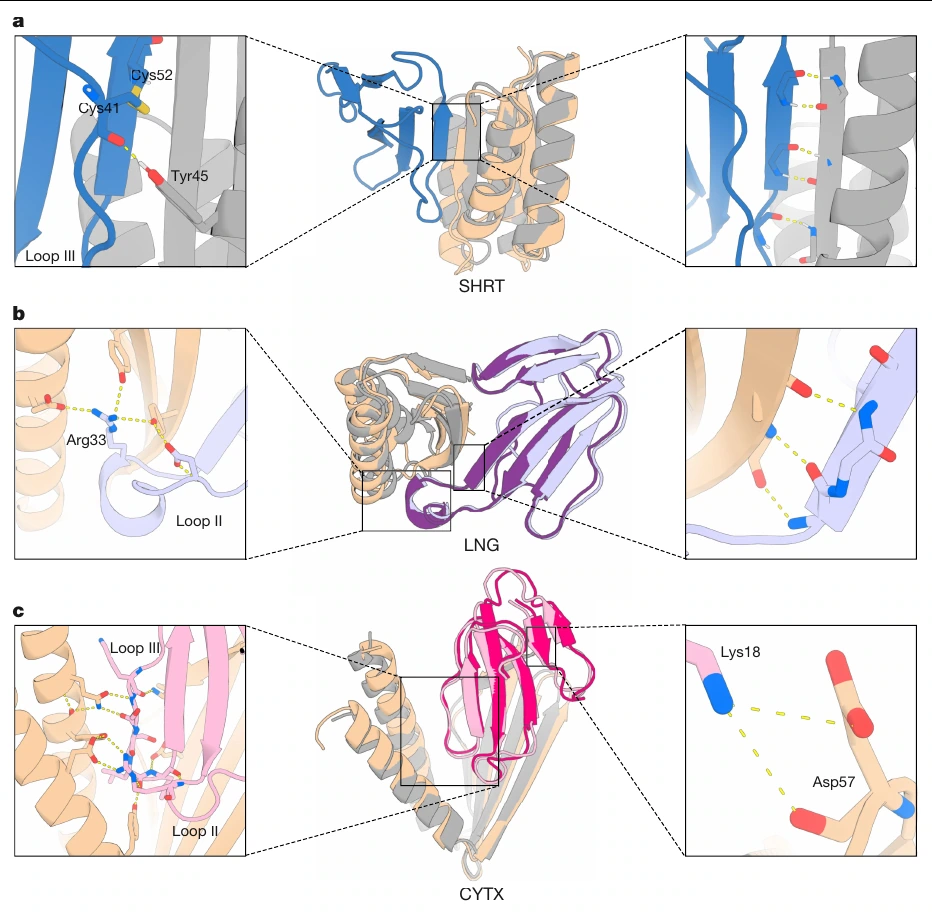
原图来源:所用 PDF 文件第 4 页,Figure 3。点击图片可查看原图。
图3是结构证据最强的一环,但三个对象证据不同。SHRT测得的是游离蛋白晶体,验证折叠;图中的毒素接触部分仍来自设计模型。LNG与α-cobratoxin、CYTX_B10与细胞毒素的复合物结构则真实检验界面,支持设计几何接近实验。低RMSD不等于整个疾病机制都被证明,它回答的是结构吻合;结合位置是否足以功能中和要由下一图测试。将游离结构和复合物结构区分,是避免夸大AI“原子级验证”的关键。
| 子图 | 讲解 |
|---|---|
| a | SHRT 的游离晶体结构与设计模型叠合,并示意设计中和 ScNtx 的氢键;游离结构验证折叠,毒素接触仍按设计模型显示。 |
| b | LNG–α-cobratoxin 复合物晶体结构显示界面氢键和 β 链配对,与设计姿势吻合。 |
| c | CYTX_B10–Naja pallida 细胞毒素复合物结构显示界面静电网络和盐桥,实验确认另一类毒素的结合几何。 |
Figure 4|功能中和与小鼠存活
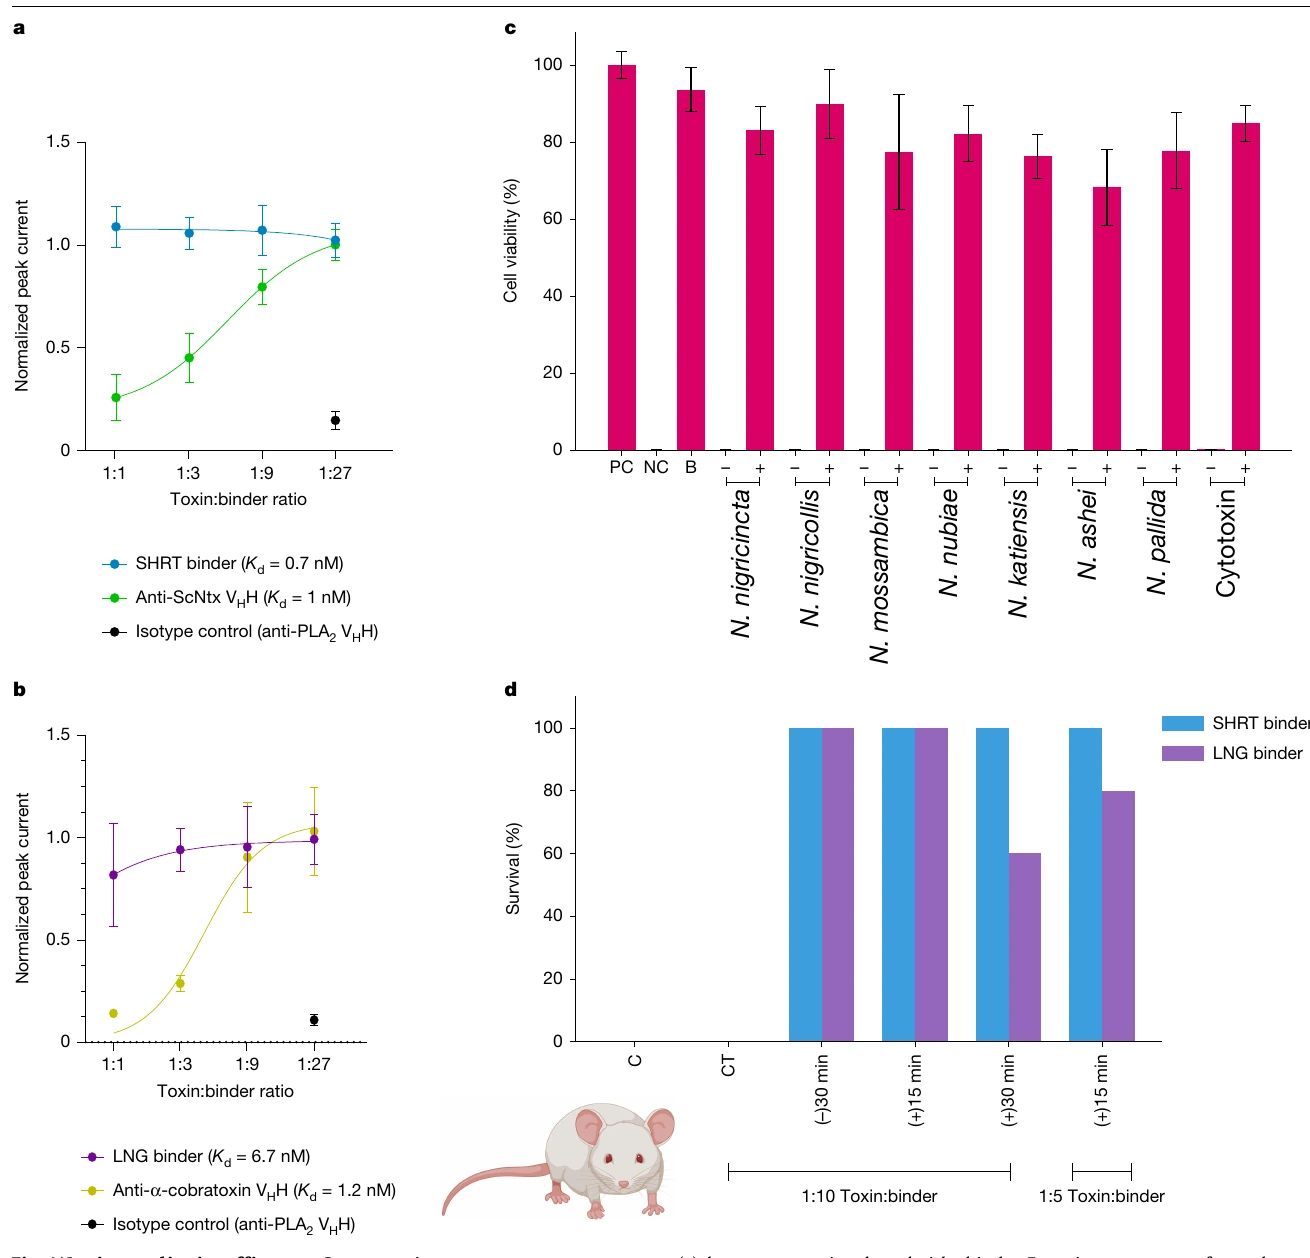
原图来源:所用 PDF 文件第 6 页,Figure 4。点击图片可查看原图。
图4把结合转成功能。受体电流恢复是神经毒素中和读数,角质形成细胞存活检验七种全毒液的细胞毒性,两者并不对应同一疾病终点。小鼠神经毒素实验又区分预孵育和注射后救援;15分钟与30分钟延迟、1:10与1:5比例都影响保护程度,尤其LNG较晚给药保护下降。交叉靶标对照支持特异性,却也说明需要组合覆盖不同毒素。正文还报告CYTX未显著减轻受测小鼠皮肤坏死,因此体外广谱细胞保护不能扩大成全毒液体内治愈。
| 子图 | 讲解 |
|---|---|
| a | 比较 SHRT 与抗 ScNtx 纳米抗体的浓度–效应曲线,以恢复 ACh 受体响应衡量神经毒素中和。 |
| b | LNG 与抗 α-cobratoxin 纳米抗体作同类比较,验证长链神经毒素中和。 |
| c | 用 CYTX 处理七种眼镜蛇全毒液和单独细胞毒素,比较角质形成细胞存活;显示对多种毒液的细胞毒性具有中和能力。 |
| d | 致死剂量神经毒素的小鼠存活曲线比较预孵育、毒素注射后延迟给结合蛋白及交叉靶标对照;显示保护作用及靶标特异性,并检查治疗时间窗。 |
依据:对应主图、完整图注及正文 Results;实验结果只按本文给出的对象和条件解释。
从分子几何到疾病结果的感悟
本文的创新由清楚的生物学约束驱动。模型需要知道毒素哪一面接近受体或膜,才能把生成空间收窄到具有功能意义的结构;这提示深度学习研究不只是增加参数,更重要的是把可检验机制转成输入条件和选择标准。
如果借鉴到AD序列或TE研究,我会先确定希望解释的分子过程,例如特定细胞类型中的调控活动,再决定模型如何编码局部序列和上下文。网络归因只能提出可能功能部位,独立扰动或外部组学证据才承担功能验证。没有湿实验时应明确终点是候选及机制支持,而不是完成治疗设计。
另一点是负结果很重要。亲和力较弱的CYTX和体内皮肤实验提醒我们,结合、体外保护和体内效果之间存在暴露、组织环境及时间窗口。对AD潜空间同样如此:在一个队列分离的模块可能在另一脑区不稳定,这并非可忽略的噪声,而是在告诉我们适用背景。把条件写明,研究才能产生下一步有针对性的改善。
个人硬件适合使用预训练模型进行有限候选推断或局部优化,不必从头训练RFdiffusion级别的结构生成器。纯计算项目可以比较结构策略、候选稳定性与独立公开数据,但本文的完整治疗证据依赖实验资源,不能照搬其论文终点。学习它的证据分层,比复制一个生成器名字更有实质价值。
